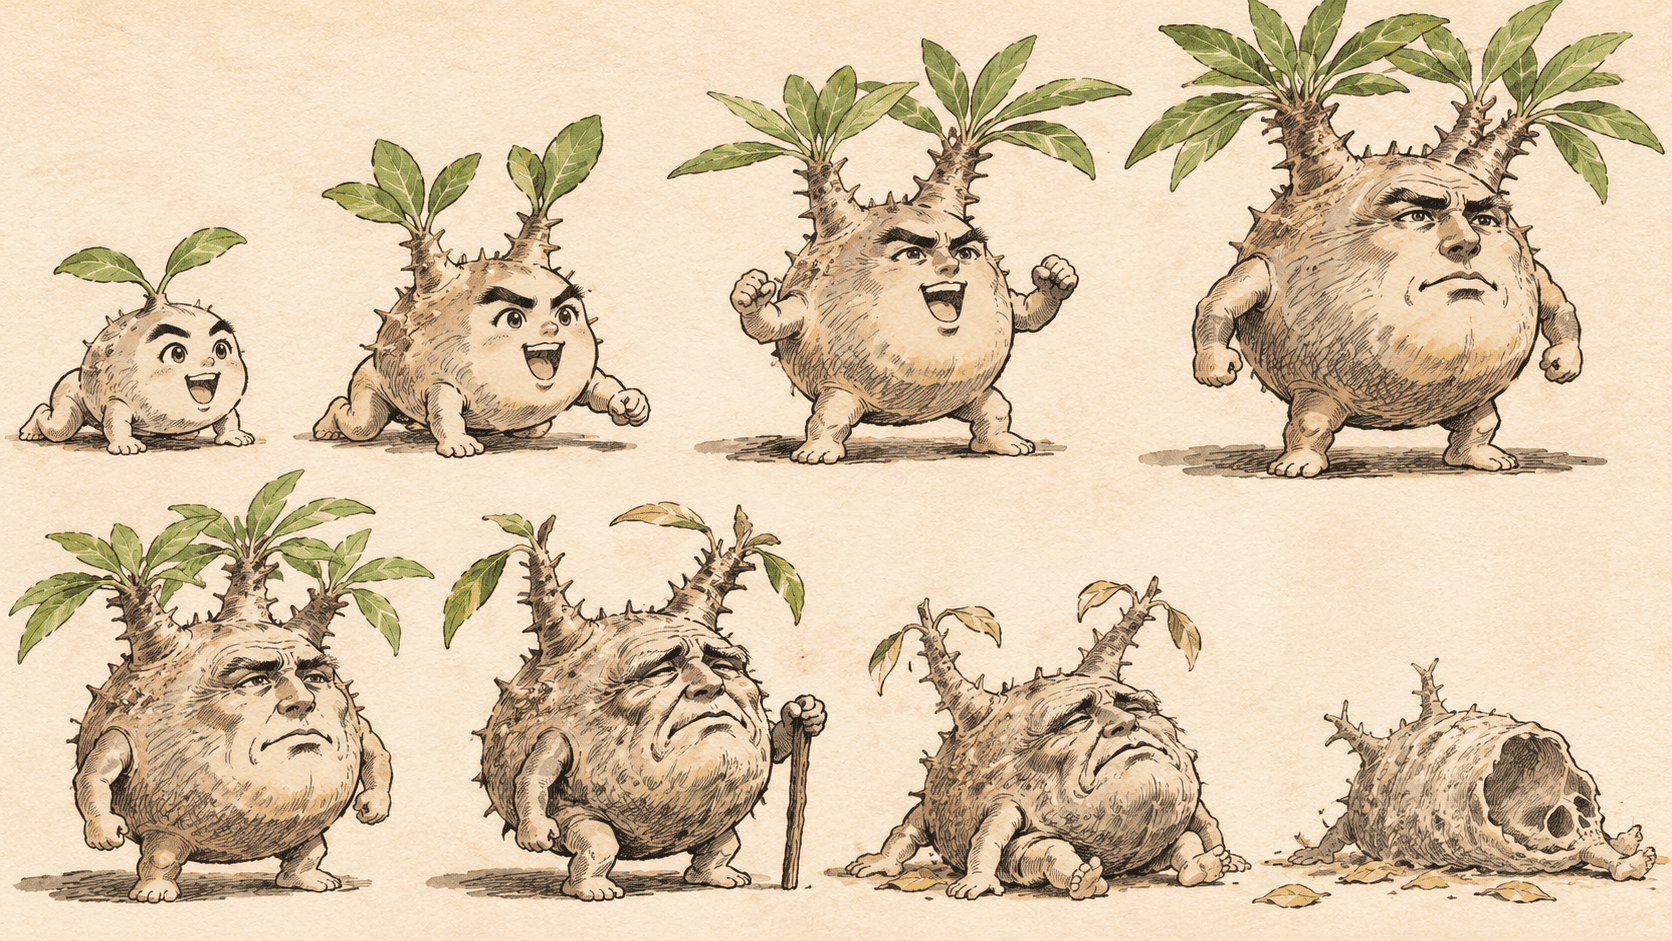
塊根植物の寿命は年数ではなく条件で決まる
塊根植物を育てていると、ある時点で「この株はあと何年生きるのか」という問いが浮かびます。数万円の現地球を買ったとき、あるいは実生から3年目の株が急に太り始めたときに、寿命と成長速度の感覚が欲しくなります。ただ、この問いにはそもそも前提のズレがあります。植物の寿命は、動物のように「生まれつきの年数」として決まっているわけではありません。🌱
自生地では100年を超える個体が普通に存在します。一方で、栽培下では数年で枯らすケースもあります。この差を生んでいるのは、株の「老い」ではなく、根が呼吸できる環境がどれだけ続いているかです。本記事では、寿命の考え方、自生地で実測されている成長速度、年齢を推定する方法とその限界、そして古株を読み解く手がかりを、植物生理学と解剖学の視点から整理します。品種ごとの考え方は植物別育成ガイドもあわせてご覧ください。
結論:塊根植物の大半は多回結実型で、遺伝的に決まった寿命を持ちません。自生地ではパキポディウム・ナマクアナムが年0.5〜1.5センチの速度で100年以上生き(Golding, 2002)、300年以上に達する可能性も指摘されています(Rundel et al., 1995)。ただし栽培下の成長速度は自生地を大きく上回るため、サイズから年齢を逆算することはできません。古株らしさを読むなら、太さではなく、枝の分岐階層と周皮の複雑さを見るのが確実です。そして栽培株が衰える最大の原因は加齢ではなく、用土の物理性が崩れて根域が酸欠になることです。✅
植物の「寿命」が動物と違う理由
動物の寿命は、ほぼ固定された身体の設計が時間とともに摩耗することを前提に語られます。植物はこの前提を満たしません。植物は分裂組織(細胞分裂を繰り返す成長点のことで、茎頂・根先・形成層などがあたる)を保持し、器官を作り続けるモジュール構造の生物です。古い部分が死んでも、新しい部分が作られる限り個体は続きます(Thomas, 2013)。🌿
この構造のため、多年生植物では加齢による性能低下が検出されないケースが多く、無視できる老化、さらには加齢とともに生理性能が向上する例まで報告されています(Munné-Bosch, 2015)。個体群を統計的に解析した研究でも、生存率を決めているのは年齢ではなくサイズ段階だという構造が広く示されています(Caswell & Salguero-Gómez, 2013)。小さい株が危険で、大きい株が安全という構図です。
例外は一回結実型です。モノカルピック(一生に一度だけ開花・結実して枯死する性質)を持つアガベは、7〜60年の栄養成長を経て花茎を立て、結実後に枯れます(Nobel, 1988)。この場合だけは、寿命が生活史に組み込まれています。ただし子株を出す種では、遺伝的に同じ個体群としては生き残ります。つまり「株が死ぬ」ことと「系統が終わる」ことは別です。⚠️
自生地で確認されている寿命と成長速度
実測データがある種は限られていますが、桁をつかむには十分です。パキポディウム・ナマクアナムは、南アフリカのリヒタースフェルトで年0.5〜1.5センチという速度で伸び、100年以上の個体が普通に見られます(Golding, 2002)。この種は夏の極乾期を休眠でやりすごし、冬に成長を集中させます。その緩慢で規則的な成長が、300年以上の寿命につながる可能性が指摘されています(Rundel et al., 1995)。🏜️
乾燥地の長寿多肉で最もデータが揃っているのはサグアロです。10年生で樹高3〜5センチ、開花可能な2.5メートルに達するのに30〜40年、通常の寿命は150〜200年とされます(Steenbergh & Lowe, 1983;Pierson et al., 2013)。またナミブ砂漠のウェルウィッチアでは、放射性炭素年代測定により塊茎基部の最古組織が531年前後と算定され、垂直方向の成長が年0.47〜0.67ミリと試算されました(Martin et al., 2026)。
これらに共通するのは、年間成長量がミリからセンチ単位だという点です。年間成長が小さいほど、現地で見る大型株は長い時間を経ています。ただしこの数字は「降水が少なく養分も乏しい環境での結果」であって、植物の潜在能力の上限ではありません。💡
| 種 | 年間成長 | 確認される寿命 |
|---|---|---|
| パキポディウム・ナマクアナム | 0.5〜1.5 cm | 100年以上(300年超の推定あり) |
| サグアロ | 若苗期は数mm〜数cm | 150〜200年(最長約300年) |
| ウェルウィッチア | 0.47〜0.67 mm(垂直) | 500年以上 |
年齢を推定する方法と、その限界
樹木の年齢は年輪を数えて決めます。この手法が塊根植物にそのまま使えるかは、種によって異なります。チワワ砂漠のオコティヨでは、22年間追跡した実生の年輪数が実年齢と一致しました。興味深いのは、伸長が全く認められない年が最大9回あっても、年輪は形成されていたことです(Killingbeck, 2017)。年輪は「伸びた記録」ではなく「季節が循った記録」だということです。🔍
一方で、年輪法が成立しない群もあります。ウェルウィッチアは年輪を形成せず、年輪年代学の適用自体ができません(Martin et al., 2026)。多肉植物の茎や塊根を解剖した研究でも、放射組織や軸方向組織に広大な柔細胞が占め、薄い細胞壁の繊維が優占する構造が共通して観察されています(Romero, 2022)。水を貯めるために柔らかい組織を增やした結果、年境界が残りにくくなっています。
そこで実際に使われるのが、サイズから年齢を推定する統計モデルです。サグアロでは立地別の年齢・樹高モデルが観測年齢の分散の89〜97パーセントを説明しました(Pierson et al., 2013)。この精度は高いですが、「立地別」が前提です。同じ種でも降水量や温度が違えば曲線は別物になります。つまり塊根植物の年齢は測定ではなく推定であり、生育条件とセットでしか意味を持ちません。販売ページに書かれた「樹齢○十年」という表記は、根拠の示されない推測値であることが大半です。⚠️
栽培下の成長速度は自生地と別物
自生地の数値をそのまま自室の株に当てはめると、大きく外します。自生地の年0.5センチという数字は、水も養分も根域温度も制限された結果です。条件が揃えば、同じ植物がはるかに速く成長します。アデニウムでは実生株が8〜12か月で開花に至る例が報告されています(Dimmitt & Hanson, 1991)。💧
肥大の実体は、維管束形成層(茎の内側にある円筒状の分裂組織で、太りを生み出す)による二次成長と、貯水柔細胞の膨張です。細胞が伸びるためには内側から押す圧力が必要で、この圧力がある閾値を下回ると伸長は完全に止まります。つまり、枯れない程度の水を維持していても、水分が足りなければ肥大はゼロになります。幼苗期の水設計については塊根植物の実生苗は水やりで太るで詳しく整理しています。
多肉植物における水貯蔵は、乾季にも組織の水ポテンシャルを保ちながら炭素獲得を続けるための機構です(Males, 2017)。この戦略は生存に有利ですが、貯蔵組織を作るコストがかかるため成長は緩やかになります。栽培下で「思ったより太らない」と感じる場合、元々の成長速度が遅いのか、環境が抑制要因になっているのかを分けて考える必要があります。実生の初期段階でどこに差がつくかは、グラキリスの実生発芽と初期育苗の解説が参考になります。🌱
古株を見分ける四つの手がかり
古株らしさは、「時間をかけないと作れない構造」に表れます。逆に、数年で再現できてしまう特徴は年齢の根拠になりません。以下の四つは、形態形成の機構から考えて時間と相関します。👀
- 周皮の厚みと亀裂パターン:周皮はコルク形成層から作られ、スベリンやリグニン様物質を蓄えて保護層になります(Wunderling et al., 2018)。内側で新しいコルク形成層が何度も作られた株は、樹皮が厚く、剥離と亀裂の重なりが複雑になります。
- 枝の分岐階層:分岐は時間の関数です。サグアロが最初の腕を出すのは50〜70年目とされます(Steenbergh & Lowe, 1983)。塊根植物でも、3次・4次の細かい枝が整っている株は、それだけ成長期を重ねています。
- 根の階層構造:太い側根が複数段階に分岐する構造は短期間では作れません。ただし現地球は輸送時に根を切られるため、この手がかりは失われています。
- 傷の履歴:古傷のカルス、旧枝の脱落痕、虫食痕が重なっていることは、長期間屋外環境にさらされた証拠になります。
逆に、年齢の指標にならない特徴もはっきりしています。塊根の太さは養分と水で短期間に変わります。しわの深さは貯水量と脱水状態を反映しているだけで、水を吸ったとたん消えることもあります。表皮の色の濃さも、光量と周皮の厚みで変化します。現地球を選ぶときに何を見るべきかは、輸入株の選び方と初期ケアの解説もあわせて確認してください。✅
代表属ごとに違う「寿命」の意味
パキポディウムは多回結実型で、理論上の寿命上限は非常に長い属です。アフリカ産のナマクアナムとマダガスカル産のグラキリスでは生育条件が大きく異なり、属内の系統も深く分かれています(Burge et al., 2013)。同じ属だからといって、成長速度や休眠の取り方をそのまま流用するのは適切ではありません。🌿
アガベは一回結実型なので、他属とは話が逆になります。強光・適温・十分な養水分を与えて良く育てるほど、開花までの年数は短くなります(Nobel, 1988)。コレクションとしては子株を取ることで続けられますが、マザー株そのものを永く維持することはできません。この点を知らないと、開花を「調子が良い証拠」と誤解します。
ユーフォルビアは多回結実型が主体ですが、多くが雌雄異株のため、単独個体では種が取れません。個体の維持と繁殖は別問題として扱う必要があります。アデニウムは栽培下で特に成長が速いため、サイズと年齢の乖離が最も大きい属の一つです。太いアデニウムが必ずしも古株ではない、と言い換えられます。極端に緩慢な属の代表例としてはオペルクリカリアがあり、その形態と自生環境はオペルクリカリア・パキプスの分類・形態解説で整理しています。⚠️
衰えの正体は老化ではなく根域環境の劣化
「最近動きが悪いのは株が老いたから」という説明は、多くの場合誤りです。栽培株の失速は、時間とともに用土の物理性が変化した結果として説明できます。有機質の分解が進むと粒子が崩れ、大きな孔隙が潰れます。灌水ごとに微細粒子が下層に移動し、排水層を塗りつぶします。根鉢化も通気を下げます。💧
こうして根域の酸素が足りなくなると、根の呼吸が制限されます。根はエネルギーを使って水と養分を吸っているため、呼吸が落ちれば吸水も養分吸収も落ちます。葉が小さくなり、肥大が止まり、最終的に嫌気的な腐敗に移行します。この連鎖は年齢と無関係に起こります。実際、蓄積された知見は「連続的な成長が老化を回避させる」ことを示唆しています(Munné-Bosch, 2015)。成長を止めさせないことが、そのまま延命になります。
だから判断の順序は明確です。株の調子が落ちたら、まず鉢の中を疑います。灌水後の水の抜け方、排水孔から出る水の濁り、表土の固まり方を確認します。次に温度と光を確認します。それでも説明がつかないときに初めて、病害や根の損傷を疑います。年齢を原因にするのは、これらをすべて消し込んだあとです。
長く育てるための環境設計
塊根植物を数十年単位で維持するなら、毎日の作業よりも、数年スケールで崩れる要素を管理することが重要です。以下は優先度順の整理です。🌡️
- 用土の物理性:灌水後に空気が戻る構造を維持します。分解しやすい有機質が多い用土は、数年で孔隙が潰れます。
- 植替え周期:株の大きさではなく、用土の劣化を基準にします。水の抜けが明らかに遅くなったら時期です。
- 水分:生育期は膨圧を維持できる頻度で与えます。乾燥一辺倒は肥大を止めます。
- 光:積算光量が不足すると炭素収支が赤字に傾き、翌年の成長が落ちます。
- 温度:冬の低温と過湿が同時に起きる状態が、栽培下で最も危険です。
光については、属ごとに要求量が違います。具体的な指標は品種別の光量ガイド(PPFDとDLI)にまとめています。根域側では、無機質を主体にしつつ、最低限の保水と陽イオン交換容量を持たせる設計が有効です。PHI BLENDは無機質75パーセント(日向土・パーライト・ゼオライト)と有機質25パーセント(ココチップ・ココピート)で構成しており、孔隙が潰れにくい配合を狙っています。長期維持を前提に用土を見直すときの選択肢の一つとして検討してください。✅
まとめ:年数を数えるより、条件を維持する
塊根植物の寿命を一つの数字で答えることはできません。一回結実型のアガベは開花で終わり、多回結実型のパキポディウムやユーフォルビアは条件が続く限り生き続けます。自生地で100年超の個体が普通に見られるのは、環境が厳しくても成長が止まらないからです。🌱
手元の株の年齢を知りたい場合は、まず属と原産地、次に由来(実生か現地球か)を確認し、その上で分岐階層と周皮の複雑さを見ます。太さだけで判断すると、肥培された実生株を古株と誤認します。そして育てる側ができる最大の延命策は、根が呼吸できる状態を何年も維持することです。年数を数えるより、条件を崩さないことのほうが、結果に直結します。⚠️
参考文献
- Burge, D. O. et al., 2013, Phylogeny of the plant genus Pachypodium (Apocynaceae), PeerJ
- Caswell, H. & Salguero-Gómez, R., 2013, Age, stage and senescence in plants, Journal of Ecology
- Dimmitt, M. A. & Hanson, C., 1991, The genus Adenium in cultivation, Cactus and Succulent Journal
- Golding, J., 2002, Southern African Plant Red Data Lists, SABONET
- Killingbeck, K. T., 2017, Are growth rings accurate fingerprints of plant age in a stem-succulent, drought-deciduous shrub growing in the Chihuahuan Desert?, Journal of Arid Environments
- Males, J., 2017, Succulent plants, Current Biology
- Martin, S. L. F. et al., 2026, Determining vertical growth patterns and tissue of maximum age using radiocarbon dating in Welwitschia mirabilis, Radiocarbon
- Munné-Bosch, S., 2015, Senescence: Is It Universal or Not?, Trends in Plant Science
- Nobel, P. S., 1988, Environmental Biology of Agaves and Cacti, Cambridge University Press
- Pierson, E. A., Turner, R. M. & Betancourt, J. L., 2013, Regional demographic trends from long-term studies of saguaro across the northern Sonoran Desert, Journal of Arid Environments
- Romero, G. E., 2022, Stem and caudex anatomy of succulent plant species, Adansonia
- Rundel, P. W. et al., 1995, Winter growth phenology and leaf orientation in Pachypodium namaquanum, Oecologia
- Steenbergh, W. F. & Lowe, C. H., 1983, Ecology of the Saguaro III, National Park Service
- Thomas, H., 2013, Senescence, ageing and death of the whole plant, New Phytologist
- Wunderling, A. et al., 2018, A molecular framework to study periderm formation in Arabidopsis, New Phytologist